Stem Cell–Based Rejuvenation

우리 몸의 수많은 조직은 일평생 동일한 세포를 유지하는 대신, 손상되거나 수명을 다한 세포를 끊임없이 새로운 세포로 교체하며 생명력을 이어나간다. 이 정교한 역동성의 중심에는 스스로의 정체성을 유지하는 동시에 필요한 세포를 만들어내는 성체 줄기세포(adult stem cell)가 존재한다.
2023년 López-Otín 등은 노화 의학의 이정표인 Hallmarks of Aging 개정 논문을 통해 ‘줄기세포 고갈(stem cell exhaustion)’을 노화의 핵심 특징 중 하나로 재확인하였다. 이는 연령이 증가함에 따라 조직의 항상성을 유지하고 상해 후 회복을 주도하는 줄기세포의 재생 능력이 저하되는 현상을 노화 생물학의 치명적 변화로 규정한 것이다 (López-Otín et al., 2023).
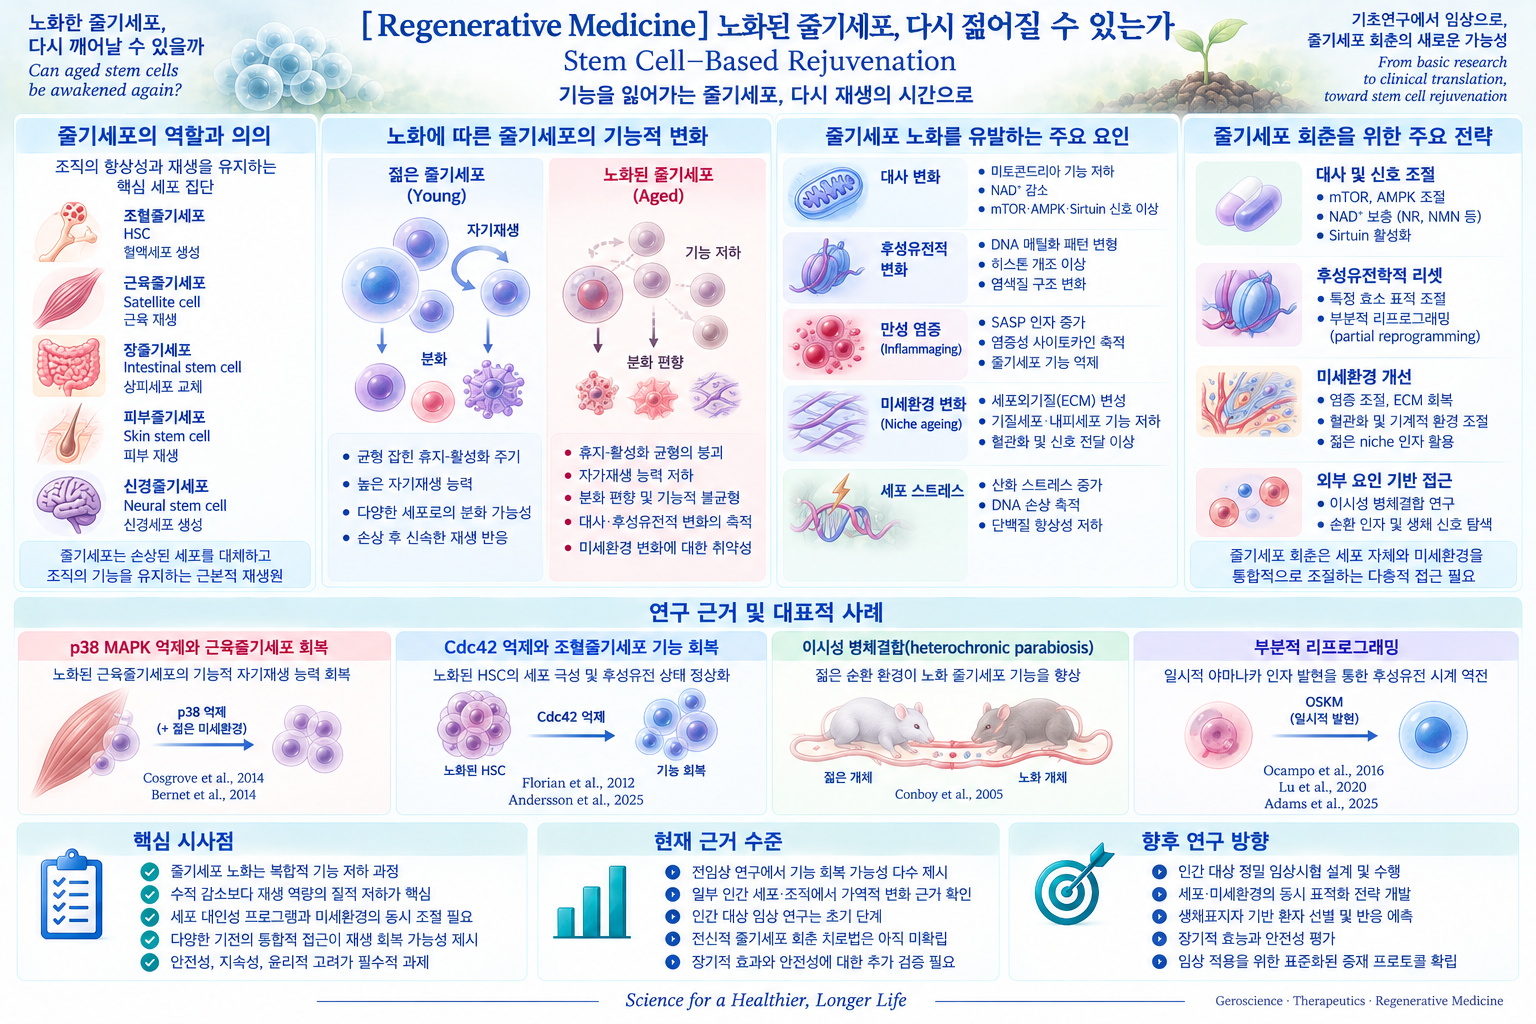
줄기세포 고갈은 단순히 세포의 절대적 수량이 줄어드는 단편적 현상만을 의미하지 않는다. 이는 휴지 상태(quiescence)와 활성화 간의 정교한 균형, 자기재생(self-renewal) 능력, 대사 및 후성유전학적 조절, 그리고 줄기세포를 둘러싼 미세환경(niche)이 복합적으로 변성되며 재생 역량(regenerative capacity) 자체가 감퇴하는 과정이다 (Brunet et al., 2023; Rando et al., 2025).
따라서 재생의학의 궁극적 지향점은 단순히 외부 세포를 주입하는 차원에 머물지 않는다.
근본적인 질문은
“줄기세포 자체의 노화를 되돌림으로써, 조직 본연의 재생 능력을 되살릴 수 있는가?”이다.
줄기세포 고갈: 단순한 수적 감소를 넘어선 기능적 변성
‘줄기세포 고갈’이라는 표현은 흔히 세포의 소멸을 떠올리게 한다. 그러나 실제 노화 과정에서 줄기세포의 수적 규모가 반드시 줄어드는 것은 아니다. 오히려 일부 조직에서는 줄기세포의 외형적 수치는 증가하되, 그 기능은 대폭 저하되는 양상이 관찰된다 (Rando et al., 2025).
대표적인 예가 조혈줄기세포(hematopoietic stem cell, HSC)다. 노화된 조혈계에서는 HSC의 수가 증가할 수 있으나, 장기적인 재생 능력과 림프구 계열 분화 능력은 감퇴하고 골수계 세포로 분화가 편향되는 불균형이 나타난다. 결국 핵심은 줄기세포의 절대적 수량이 아닌, 얼마나 건전하게 자기재생 능력을 유지하며 적절한 세포로 분화할 수 있는가에 있다 (Cain et al., 2025; Andersson et al., 2025).
이러한 관점에서 줄기세포 노화는 단순한 ‘소진’이라기보다 ‘재생 역량의 구조적 감소’로 정의하는 것이 타당하다. 2025년 Cell Stem Cell에 발표된 리뷰 역시 줄기세포 노화를 세포 내·외적 요인이 결합된 복합적 기능 저하 과정으로 설명한다 (Rando et al., 2025).
휴면과 활성화: 조율되지 않은 리듬의 위기
성체 줄기세포는 평시 분열을 멈추고 가역적 휴지 상태(quiescence)를 유지하다가, 조직 손상이나 생리적 요구가 발생할 때 활성화되어 증식 및 분화를 시작한다. 이 휴지 상태는 줄기세포의 잠재력을 평생 보존하기 위한 필수적인 생체 보호 전략이다 (Brunet et al., 2023; Mitra et al., 2025).
그러나 노화는 이 정교한 동적 균형을 흔든다. 어떤 줄기세포는 필요한 순간에 충분히 깨어나지 못하는 반면, 다른 줄기세포는 불필요하게 과활성화되어 줄기세포 저장고를 조기에 소모해 버린다. 활성화 이후 다시 안정적인 휴지 상태로 되돌아가는 재휴지(re-quiescence) 메커니즘 역시 손상된다 (Brunet et al., 2023; Mitra et al., 2025; Rando et al., 2025).
따라서 줄기세포 회춘의 본질은 무조건적인 세포 분열 촉진에 있지 않다. 언제 휴식하고, 언제 깨어나며, 언제 다시 줄기세포 상태로 복귀할 것인가를 결정하는 ‘세포 운명 제어력의 회복’이야말로 자가복제 능력을 되살리는 핵심 열쇠다 (Brunet et al., 2023; Rando et al., 2025).
자기재생 능력의 상실: 재생 저장고의 고갈
줄기세포의 가장 독보적인 특성은 분열 후에도 일부 딸세포가 줄기세포 고유의 정체성을 유지하는 자기재생(self-renewal)이다. 손상된 조직을 수복하면서도 줄기세포 자원 자체를 보존해야 지속 가능한 재생이 가능하기 때문이다 (Brunet et al., 2023; Rando et al., 2025).
노화된 근육의 근육줄기세포(satellite cell)에서는 p38 MAPK 신호가 과도하게 활성화되면서 자기재생 능력이 현저히 저하된다. 2014년 연구에 따르면, 노화된 근육줄기세포의 p38α/β MAPK 활성을 일시적으로 억제하고 젊은 조직 고유의 물리적 환경을 제공했을 때, 기능적 줄기세포의 자가복제가 재활성화되고 노령 생쥐의 근육 재생 능력 및 근력이 유의하게 향상되었다 (Cosgrove et al., 2014; Bernet et al., 2014).
이 발견은 중요한 개념적 전환을 제시했다. 노화된 줄기세포의 상당수는 기능을 영구히 상실한 것이 아니라, 교란된 신호 체계와 미세환경 속에서 그 재생 능력이 억제되어 있을 가능성을 입증한 것이다 (Cosgrove et al., 2014; Bernet et al., 2014).
세포 대사의 노화: 대사물질과 후성유전의 교차로
줄기세포의 운명은 유전체 정보만으로 결정되지 않는다. 휴지 상태의 유지, 활성화, 자기재생으로 이어지는 각 단계마다 요구되는 에너지원과 대사 경로가 엄격히 구별된다. 즉, 세포 대사(metabolism)는 단순한 에너지 공급원을 넘어 세포의 운명을 지시하는 신호 체계로 작용한다 (Brunet et al., 2023; Rando et al., 2025).
노화에 따라 미토콘드리아 기능 장애, 자가포식(autophagy)의 쇠퇴, 단백질 항상성 균형 파괴, NAD⁺ 대사 축소가 진행되며, mTOR·AMPK·Sirtuin 등 주요 영양 감지 경로가 둔화된다 (Brunet et al., 2023; Rando et al., 2025).
특히 이러한 대사 변화는 후성유전학적 조절과 밀접하게 연동된다. NAD⁺, acetyl-CoA 등 주요 대사물질은 후성유전 효소의 기질로 작용하므로, 줄기세포의 대사 환경을 교정하는 것은 단순한 에너지 재충전을 넘어 유전자 발현 패턴과 세포 정체성을 재정비하는 후성유전학적 리셋으로 이어질 수 있다 (Brunet et al., 2023; Rando et al., 2025).
후성유전적 축적: 세포의 기억과 정체성의 변성
줄기세포는 조직 내에 오랜 기간 머물며 축적된 산화 스트레스, 염증, 대사 변성 자극을 수용한다. 이 과정에서 DNA 메틸화, 히스톤 개조, 염색질 구조 변화 등 후성유전학적 표지(epigenetic mark)의 변형이 지속적으로 누적된다 (Brunet et al., 2023; Rando et al., 2025).
이러한 변화는 단순한 노화의 흔적을 넘어, 줄기세포가 휴지 상태를 유지하거나 특정 세포로 분화하는 유전자 프로그램 자체를 왜곡한다. 동일한 유전체를 가지고 있음에도 노화된 줄기세포는 젊은 세포와 전혀 다른 방식으로 유전자 정보를 읽게 되는 것이다 (Brunet et al., 2023; Rando et al., 2025).
조혈줄기세포 연구는 이러한 가역적 회복 가능성을 명확히 보여준다. 노화된 HSC에서 과활성화된 Small GTPase Cdc42의 작용을 약리학적으로 억제하자, 세포 극성(polarity)과 히스톤 H4K16 아세틸화 패턴이 젊은 세포 수준으로 재배치되며 기능이 원상 복구되었다 (Florian et al., 2012). 인간 노화 HSC에서도 유사한 기전이 확인되면서 줄기세포 노화의 가역성에 대한 학술적 근거가 한층 강화되었다 (Andersson et al., 2025).
줄기세포 미세환경(Niche): 세포가 살아가는 터전의 노화
줄기세포는 독립적으로 존재하지 않는다. 기질세포, 내피세포, 면역세포, 세포외기질(ECM), 다양한 성장인자가 정교한 구성을 이루는 미세환경(niche) 안에서 비로소 고유의 기능을 발휘한다 (Brunet et al., 2023; Cain et al., 2025).
노화가 진행되면 niche 역시 만성 염증(Inflammaging), ECM의 기계적 강도 변성, 신호 전달체계의 불균형을 겪는다. 골수 미세환경의 구조적 변성은 조혈모세포의 기능 저하와 분화 편향을 직접 유발하며, 다른 실질 장기에서도 변성된 niche가 줄기세포의 정상적 재생 반응을 방해한다 (Brunet et al., 2023; Cain et al., 2025).
따라서 현대 줄기세포 회춘 의학은 세포 자체와 미세환경을 단일 생태계로 바라본다. 젊은 줄기세포라 할지라도 노화된 환경에 이식되면 기능이 억제되며, 반대로 노화된 줄기세포일지라도 미세환경이 개선되면 잠재된 재생 능력을 다시 발휘할 수 있기 때문이다 (Conboy et al., 2005; Brunet et al., 2023).
젊은 미세환경의 자극: 이시성 병체결합이 던진 화두
미세환경의 중요성을 입증한 고전적 연구가 서로 다른 연령 개체 간의 병체결합(heterochronic parabiosis)이다. 2005년 Conboy 연구팀은 젊은 개체와 노령 개체의 순환계를 연결했을 때, 노령 개체의 근육줄기세포에서 Notch 신호와 증식 능력이 회복되어 근육 재생 능력이 유의하게 향상됨을 보고하였다 (Conboy et al., 2005).
이후 연구들은 단순한 단일 ‘회춘 인자’의 발굴을 넘어, 젊은 환경이 제공하는 유익한 신호의 증가와 노화된 환경에 축적된 억제성·염증성 신호의 감소가 결합된 복합적 기전을 제시하고 있다 (Brunet et al., 2023; Rando et al., 2025).
이 연구의 진정한 의의는 ‘노화를 완전하게 되돌린다’는 단순화된 명제에 있지 않다. 노화된 줄기세포의 기능 저하 중 상당 부분이 미세환경에 의해 유지되는 가역적 상태일 수 있음을 증명한 데에 학술적 가치가 있다 (Conboy et al., 2005; Brunet et al., 2023).
줄기세포 회춘(Stem Cell Rejuvenation)의 다각적 중재 전략
현재 논의되는 줄기세포 회춘 전략은 다층적인 분자 기전을 동시에 표적한다 (Brunet et al., 2023; Rando et al., 2025).
- 세포 내인성 대사 및 신호 재정비: mTOR, AMPK, Sirtuin 등 영양 감지 경로와 NAD⁺ 대사를 정밀 조절하여 줄기세포의 내인성 대사 유연성과 정상적인 휴지-활성화 주기를 복원한다 (Brunet et al., 2023; Rando et al., 2025).
- 후성유전학적 리셋: 특정 표적 효소 제어부터 부분적 리프로그래밍(partial reprogramming)에 이르기까지 다양한 접근이 시도되고 있다. 특히 일시적 야마나카 인자 발현을 통한 부분적 리프로그래밍은 세포 정체성을 유지한 채 노화된 후성유전 시계를 되돌리는 가능성을 제시하지만, 테라토마 형성 등 암화 위험을 통제하기 위한 정밀한 용량 제어가 전제되어야 한다 (Adams et al., 2025).
- Niche 및 전신 미세환경 재구조화: 만성 염증을 완화하고 ECM 성상 및 혈관망 기능을 회복시킴으로써 줄기세포가 원활히 작동할 수 있는 생태계 자체를 재건한다 (Brunet et al., 2023; Cain et al., 2025; Rando et al., 2025).
임상적 적용의 현주소와 전망
여기서 기존의 세포치료제(Cell Therapy)와 Stem Cell–Based Rejuvenation의 개념적 구분이 필요하다. 조혈모세포 이식처럼 이미 확립된 이식 치료는 결손된 세포 집단을 외부 세포로 대체하는 접근 방식이다. 반면 줄기세포 회춘은 환자 체내에 존재하는 내인성 줄기세포와 그 niche의 잠재적 기능을 분자 수준에서 재활성화하는 것을 의미한다 (Brunet et al., 2023; Rando et al., 2025).
현재 노화된 인간의 내인성 줄기세포를 전신적으로 회춘시켜 건강 수명을 연장하는 검증된 임상 치료법은 존재하지 않는다. 대다수의 연구는 전임상 단계에 머물러 있으며, 인간 대상 연구는 분자적 노화 표지를 확인하거나 ex vivo 상태에서 그 가역성을 탐색하는 단계에 있다 (Brunet et al., 2023; Andersson et al., 2025; Rando et al., 2025).
그럼에도 불구하고 학술적 전망은 긍정적이다. 미세환경 조절, p38 MAPK 억제, Cdc42 제어 등 다양한 실험적 중재를 통해 노화 줄기세포의 기능 회복이 지속적으로 증명되고 있기 때문이다. 줄기세포 노화는 더 이상 비가역적인 운명이 아닌, 정밀하게 조절 가능한 세포 상태(cellular state)로 재정의되고 있다 (Conboy et al., 2005; Florian et al., 2012; Cosgrove et al., 2014; Bernet et al., 2014).
맺는말: 세포 보충에서 재생 생태계의 복원으로
노화된 조직 내에서 줄기세포는 단순히 사라지는 것이 아니다. 휴면과 활성화의 동적 리듬이 무너지고, 자가복제 능력이 감퇴하며, 대사 및 후성유전 프로그램이 변성됨과 동시에 그 터전인 niche까지 함께 노화하는 것이다 (Brunet et al., 2023; Rando et al., 2025).
따라서 줄기세포 회춘의 궁극적 목표는 단일 분자나 세포를 수복하는 차원을 넘어, 줄기세포와 미세환경이 이루는 조직 재생 생태계 전체의 조화로운 리듬을 되찾는 데 있다.
줄기세포의 나이는 완전히 고정되어 있지 않으며, 그 고유의 노화 프로그램은 적절한 중재를 통해 재조절될 수 있다 (Conboy et al., 2005; Florian et al., 2012; Cosgrove et al., 2014; Bernet et al., 2014; Brunet et al., 2023; Rando et al., 2025). 이 고무적인 분자생물학적 가능성을 안전하고 정밀한 인체 임상 치료 기전으로 승화시키는 것, 그것이 Stem Cell–Based Rejuvenation 분야가 해결해야 할 차세대 과제다.
함께 읽으면 좋은 글

• 전체 흐름: Therapeutics
• 이전 글: [Regenerative Medicine] 노화 조직의 재생과 재건
• 다음 글: [Regenerative Medicine] 다능성 줄기세포를 이용한 세포 대체
참고문헌

1. López-Otín C, Blasco MA, Partridge L, Serrano M, Kroemer G. Hallmarks of aging: An expanding universe. Cell. 2023;186:243–278. doi:10.1016/j.cell.2022.11.001
2. Brunet A, Goodell MA, Rando TA. Ageing and rejuvenation of tissue stem cells and their niches. Nat Rev Mol Cell Biol. 2023;24:45–62. doi:10.1038/s41580-022-00510-w
3. Rando TA, et al. Hallmarks of stem cell aging. Cell Stem Cell. 2025;32:1038–1054. doi:10.1016/j.stem.2025.06.004
4. Cain TL, Derecka M, McKinney-Freeman S. The role of the haematopoietic stem cell niche in development and ageing. Nat Rev Mol Cell Biol. 2025;26:32–50. doi:10.1038/s41580-024-00770-8
5. Andersson R, Mejia-Ramirez E, Florian MC. Haematopoietic ageing in health and lifespan. Nat Cell Biol. 2025;27:1398–1410. doi:10.1038/s41556-025-01739-1
6. Mitra M, Batista SL, Coller HA. Transcription factor networks in cellular quiescence. Nat Cell Biol. 2025;27:14–27. doi:10.1038/s41556-024-01582-w
7. Cosgrove BD, et al. Rejuvenation of the muscle stem cell population restores strength to injured aged muscles. Nat Med. 2014;20:255–264. doi:10.1038/nm.3464
8. Bernet JD, et al. p38 MAPK signaling underlies a cell-autonomous loss of stem cell self-renewal in skeletal muscle of aged mice. Nat Med. 2014;20:265–271. doi:10.1038/nm.3465
9. Florian MC, et al. Cdc42 activity regulates hematopoietic stem cell aging and rejuvenation. Cell Stem Cell. 2012;10:520–530. doi:10.1016/j.stem.2012.04.007
10. Conboy IM, et al. Rejuvenation of aged progenitor cells by exposure to a young systemic environment. Nature. 2005;433:760–764. doi:10.1038/nature03260
11. Adams MT, Jasper H, Mosteiro L. Unlocking regeneration: how partial reprogramming resembles tissue healing. Curr Opin Genet Dev. 2025;93:102351. doi:10.1016/j.gde.2025.102351
© 2026 Elegant Ageing
본 콘텐츠는 Elegant Ageing의 저작물입니다.
전체 복제 및 무단 재배포는 허용되지 않습니다.
내용을 인용할 경우에는 출처를 명시해 주시기 바랍니다.